
CKM综合征,从“共病聚集”到“网络紊乱”
一开始,人们认为CKM综合征不过是高血压、高血糖、高脂血症、缺氧、神经激素激活与系统性炎症等共同危险因素作用于多个器官的结果。但这个解释有三个说不通的地方:
其一 仅用共同危险因素解释CKM综合征,难以充分说明多器官功能平行衰退的现象;
其二 共享暴露只能解释“同时受伤”,解释不了一个器官坏了另一个器官跟着更坏——肾不好加重心脏负担,心脏不好又反过来伤肾,形成越转越快的恶性循环;
其三 糖尿病肾病和射血分数保留的心力衰竭虽然器官不同,却出现相似的分子应激特征。
因此,更合理的解释可能是:CKM不是几种病凑巧碰在一起,而是一种网络紊乱。因此,人们开始积极地寻找“串联点”,线粒体自然而然地进入了研究者的视野。
线粒体不仅是能量转换器,更是整合底物供应、氧张力、钙流、氧化还原平衡、脂质代谢、细胞死亡程序与先天免疫信号的决策节点。在心肌细胞、近端小管上皮细胞等持续高能耗细胞中,线粒体储备是决定应激走向代偿还是失代偿的关键。
线粒体具有四种障碍模式
线粒体功能障碍并非无律可循。线粒体稳态由四个紧密关联的环节协调维持:生物能量代谢能力(氧化磷酸化与底物处置)、氧化还原及信号调控、细胞器结构与动力学、质量控制(更新周转与损伤修复)。在CKM综合征中,当其中任何一个环节出问题,便会触发相应的障碍模式;这些障碍模式在各组织间反复上演,只是时序与主导地位因器官而异。
一、底物过载与代谢不灵活性:
线粒体无法在燃料间适当切换,导致电子过剩、ROS过量与毒性中间产物蓄积。在肾脏,线粒体脂肪酸氧化(FAO)受抑、脂质合成通路被诱导;在心脏,线粒体氧化葡萄糖利用下降。神经酰胺与酰基肉碱等不完全氧化中间产物本身即可传递损伤信号,进一步恶化线粒体功能。
二、网络重塑障碍:
慢性应激使线粒体网络向碎片化偏移。初期这可能是隔离损伤的适应性反应,但过度碎片化或融合受损时即转为适应不良,呼吸效率下降,通透性转换与细胞死亡信号更易触发。蛋白质稳态障碍(如LonP1、ClpP系统过载)亦会损害呼吸链组装。
三、细胞器对话障碍:
线粒体与内质网等细胞器的接触位点受损,改变钙转移、脂质处理与应激信号。
四、炎症转化:
线粒体DNA靠近呼吸链,易受氧化损伤。受损的mtDNA会漏到细胞质甚至血液中,被免疫系统当作“危险信号”,激活cGAS-STING、RIG-I等通路,引发炎症、成纤维细胞活化与细胞外基质堆积,最终导致纤维化。
这四种障碍模式彼此衔接、互为因果,共同构成了一条从能量危机通向炎症与纤维化的跨器官传导链。
线粒体功能障碍的器官特异性
虽然线粒体功能障碍有四种通用模式,但对不同器官的影响并不相同:代谢组织是启动的开关,心肾则各有脆弱之处。
代谢组织:上游“导火索”
在CKM的器官链条里,作为代谢组织的骨骼肌、脂肪和肝脏处于上游。它们的线粒体一旦出问题,就会通过底物溢出、炎症和内分泌信号,把伤害传给下游的心脏和肾脏。
骨骼肌:
线粒体数量与质量并非总同向变化,但超微结构异常与氧化底物灵活性受损在胰岛素抵抗状态下屡有报道。不完全脂质氧化生成的二酰甘油、神经酰胺与酰基肉碱会损害胰岛素信号;高电子通量驱动ROS与氧化损伤,并改变肌因子信号。
脂肪组织:
肥胖时,白色脂肪的氧化能力与氧化磷酸化基因表达下降,伴缺氧、巨噬细胞浸润与细胞因子产生。棕色/米色程序受抑,导致喂养状态下游离脂肪酸与炎症介质非适当释放,促进异位脂质沉积。
肥胖与代谢综合征的肝细胞线粒体肿胀、嵴结构改变、呼吸链功能障碍与ROS产生增加。当氧化能力被超越,不完全氧化与超氧物生成加剧氧化应激,推动从单纯脂肪变性向脂肪性肝炎进展,伴随的细胞死亡和炎症细胞募集可进一步导致纤维化。从CKM视角看,肝脏通过三条途径放大系统性代谢与线粒体应激:增加底物压力、增加炎症负荷、改变内分泌信号(肝因子与线粒体因子影响食欲、能量消耗与组织底物利用)。
心脏:输在“灵活性”
心脏的线粒体几乎一刻不停地燃烧燃料,为持续收缩供能。健康心脏能灵活切换脂肪酸、葡萄糖等底物;CKM状态下,这种灵活性丧失,FAO与氧化磷酸化能力下降,向糖酵解偏移。但糖酵解无法在氧化能力受抑时补足ATP;其中间产物蓄积还通过己糖胺途径增加O-GlcNAc修饰,进一步恶化线粒体损伤与心室重构(图1)。
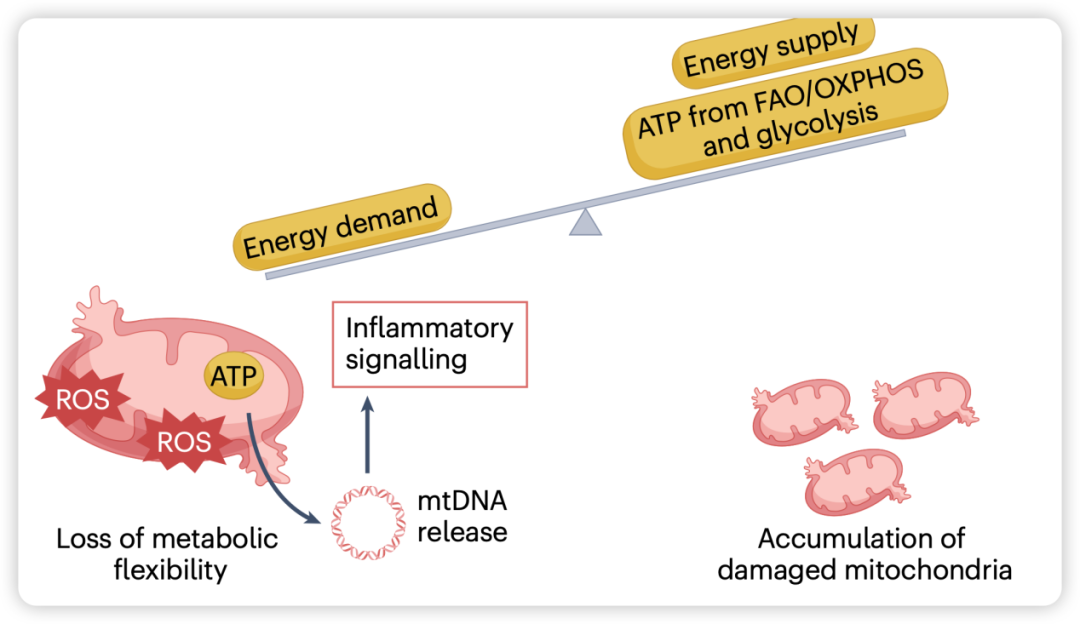
图1. 心脏线粒体功能障碍
灵活性丧失之后:ROS过量损伤线粒体脂质、蛋白质与mtDNA,并激活促纤维化与促肥厚信号;钙调节紊乱增加通透性转换孔开放易感性,触发细胞死亡;铁死亡则在氧化应激下放大脂质过氧化,参与心力衰竭与缺血损伤。
动力学与质量控制同样失守:裂变增加与碎片化常见,而慢性病程中清除系统可向任一方向障碍——清除不足留下受损线粒体,过度清除而无充分替代则可能导致线粒体净耗竭。
一句话,心脏的软肋在于:它最依赖代谢灵活性,而CKM相关状态下,心脏的代谢灵活性可逐渐受损,并由此引发ROS、钙紊乱、铁死亡与质量控制障碍的连锁反应。
肾脏:困在“高能耗”
肾脏是线粒体最丰富的器官之一,近端小管的高强度转运高度依赖ATP,使其对线粒体功能障碍尤为敏感。在持续的代谢应激(如糖尿病、高血压)下,肾脏线粒体稳态发生崩溃,推动从健康走向适应不良的重塑与进行性肾损伤,主要表现在三个相互交织的维度(图2):
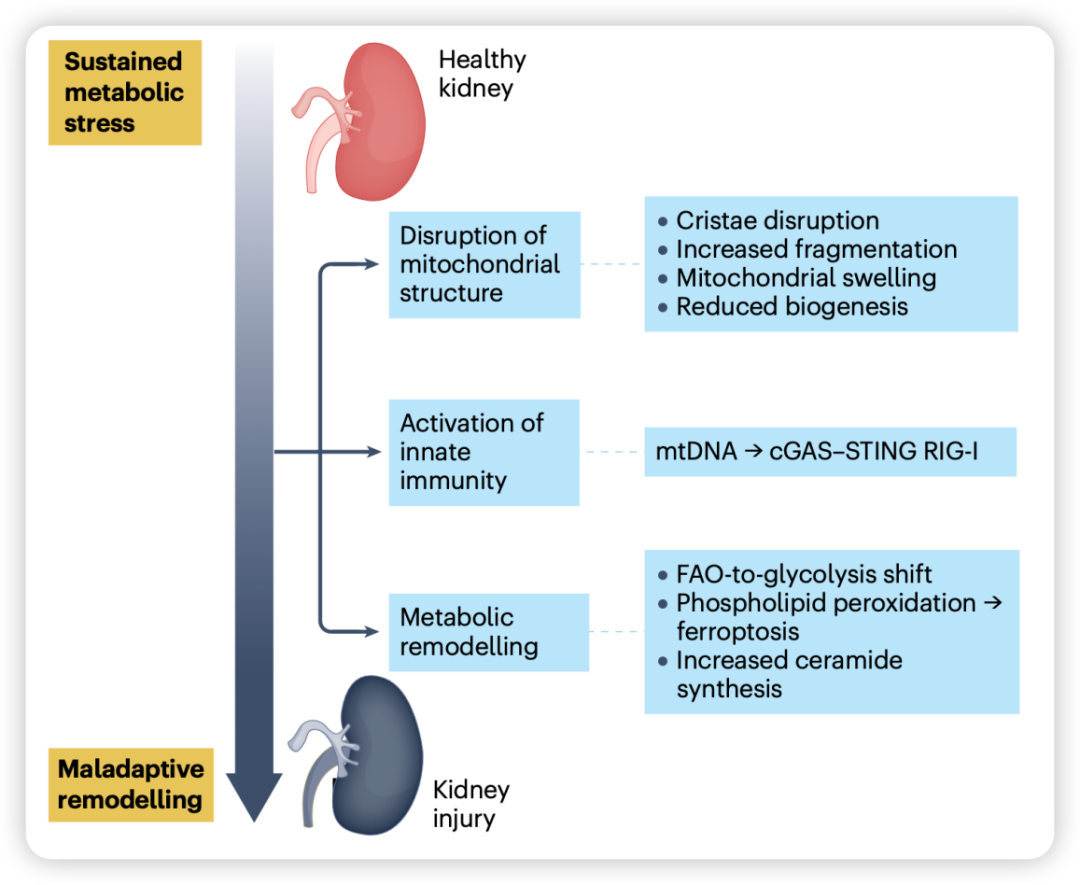
图2. 肾脏线粒体功能障碍
其一,线粒体结构破坏。持续应激导致线粒体嵴结构破坏、碎片化增加及线粒体肿胀,同时线粒体生物发生显著减少。这不仅反映了细胞器质量控制与能量储备能力的受损,也意味着应激后肾脏难以重建健康的线粒体群体,从而限制了组织修复。
其二,先天免疫激活。受损的线粒体导致线粒体DNA(mtDNA)泄漏至胞质,被免疫系统识别为危险信号,进而激活cGAS-STING和RIG-I等固有免疫通路。这种“能量障碍”向“炎症转化”的机制,直接将线粒体损伤与无菌性炎症、成纤维细胞活化及肾脏纤维化联系起来。
其三,代谢重塑。线粒体损伤伴随显著的代谢重编程:脂肪酸β-氧化(FAO)向糖酵解偏移,但由于糖酵解无法满足小管转运的高ATP需求,最终导致能量耗竭;同时,线粒体膜磷脂过氧化增加,诱导铁死亡途径;神经酰胺合成增加,进一步放大了脂毒性与促炎信号。
这三条路径并非孤立,而是相互交织,共同驱动了肾脏的适应不良性重塑与进行性损伤。更重要的是,肾脏线粒体功能障碍不仅源于氧化还原失控,更源于应激后未能重建健康的线粒体群体。因此,单纯减少损伤而不恢复线粒体替代能力的干预,可能只能有限地延缓疾病进展。
器官间线粒体对话:从单器官损伤到系统性疾病
CKM综合征的系统性特征,源于线粒体功能障碍并非局限于单一器官,而是通过多种途径向远端组织传递应激信号。当某一器官发生线粒体功能障碍时,其释放的信号会进入系统微环境,改变循环中的炎症因子与代谢物水平,进而诱导全身多器官的线粒体功能障碍(图3)。
图3. CKM各器官的线粒体对话
这一跨器官传导主要通过四条路径实现:第一,线粒体因子的释放,如FGF21与GDF15:它们在应对线粒体应激时增加,通过内分泌方式调节远端器官的食欲、能量消耗与底物利用;第二,循环代谢物与底物的传递,如琥珀酸、游离脂肪酸和神经酰胺等:它们作为应激信号直接作用于其他组织,加剧脂毒性与氧化应激;第三,mtDNA的释放:游离的线粒体DNA进入循环后作为损伤相关分子模式,激活全身固有免疫与炎症反应;第四,囊泡介导的线粒体成分转移,细胞外囊泡可携带线粒体成分甚至完整的线粒体在细胞间转移:在特定情况下参与功能性代偿或病理传播。
这些信号可改变全身炎症和代谢环境,并在特定条件下放大远端器官的线粒体应激。由于这种器官间交流具有双向性与正反馈特征,单一器官的“能量障碍”极易被放大为“系统性多米诺骨牌效应”——肾脏受损加重心脏负担,心脏衰竭反过来恶化肾脏缺血,而肝脏与代谢组织的底物溢出又持续为心肾提供“毒性燃料”。这种相互强化的网络效应,正是CKM综合征作为一种多器官系统性疾病的底层逻辑。
转化启示:从器官分类到障碍模式分类
既然线粒体在CKM综合征中扮演了如此重要的角色,治疗策略也不能只覆盖护心、保肾和降糖,更应关注按药物可有效阻断哪一种线粒体功能障碍模式。
现有治疗:可能间接改善线粒体应激
SGLT2抑制剂:
可通过影响系统性底物处理、促进类禁食信号与细胞应激反应来影响线粒体自噬与效率,还激活PANK1、促进辅酶A合成并直接刺激线粒体呼吸。
GLP-1受体激动剂:
可降低心肾的底物压力,从而缓解底物过载这一障碍模式;此外,其抗炎效应可减轻炎症对线粒体生物发生的抑制。
非奈利酮:
可能通过减少下游盐皮质激素信号介导的线粒体氧化与炎症应激实现。
研究进展:直接靶向线粒体
线粒体靶向抗氧化剂旨在从源头减少ROS,但目前疗效的证据有限且异质。
MitoQ等靶向抗氧化剂:
随机对照试点研究提示血管功能指标可能改善,但尚未确立临床获益。
Elamipretide:
心磷脂结合肽,旨在稳定线粒体内膜结构与嵴组织,已获FDA加速批准用于Barth综合征,意味着“线粒体膜稳定”可能成为成药策略,并可能加速心血管与肾脏领域的机制与转化工作。
NAD+前体(烟酰胺核糖、烟酰胺单核苷酸):
旨在增加NAD+可用性,支持sirtuin介导的线粒体生物发生与抗氧化防御;但临床研究尚未证明其在CKM人群中持续改善器官功能或临床结局。
线粒体移植:
将自体线粒体递送至缺血心肌的早期临床工作已有开展,并在心脏术后心源性休克患者中试点;但常规用于CKM尚不成熟。
大量基础研究已揭示线粒体在CKM多器官受累中的作用,并证实其障碍模式跨器官反复出现,可通过线粒体因子、循环毒素、mtDNA与囊泡等信号相互传导。然而,这条串联线的最终确立仍有赖于三项工作:加强人体因果推断、验证线粒体生物标志物组合,以及开展以多器官结局为终点的干预试验——检验靶向线粒体稳态能否真正改善肾脏、心脏与代谢结局。未来,通过这些研究,线粒体有望从“有说服力的假说”变为“可干预的靶点”,这条串联线也才算真正闭合。
参考文献:
Shen Li,Abel, E. D., Arany, Z., Baur, J. A., Pei, L., & Susztak, K. (2026). Cardiovascular–kidney–metabolic syndrome as a mitochondrial systems disorder. Nature Reviews Nephrology. https://doi.org/10.1038/s41581-026
点击文末“阅读原文”查看文献原文声明:本文仅供医疗卫生专业人士了解最新医药资讯参考使用,不代表本平台观点。该等信息不能以任何方式取代专业的医疗指导,也不应被视为诊疗建议,如果该信息被用于资讯以外的目的,本站及作者不承担相关责任。
点击文末“阅读原文”查看文献原文
最新《心肾代谢时讯》读者专属微信交流群建好了,快快加入吧!扫描左边《心肾代谢时讯》小助手二维码(微信号:
(来源:《心肾代谢时讯》编辑部)
版权声明
版权属《心肾代谢时讯》所有。欢迎个人转发分享。其他任何媒体、网站未经授权,禁止转载。
我要留言